
Generatywne projektowanie białek de novo i modelowanie allosteryczne: Jak architektury dyfuzyjne RFdiffusion i modele językowe ESM redefiniują bioinżynierię molekularną i terapię celowaną
Od pasywnego przewidywania do aktywnej syntezy architektur molekularnych
Przez ponad pół wieku największym wyzwaniem biologii strukturalnej był problem zwijania białek, sformułowany w 1969 roku jako paradoks Levintala, opisujący astronomiczną liczbę teoretycznych konformacji przestrzennych, przez które musiałby przejść łańcuch polipeptydowy, aby odnaleźć swoje minimum energetyczne. Spektakularny sukces systemów przewidywania struktur, takich jak AlphaFold i RosettaFold, doprowadził do rozwiązania tego problemu w jego klasycznym sformułowaniu, umożliwiając błyskawiczne generowanie trójwymiarowych modeli dla setek milionów znanych sekwencji aminokwasowych zgromadzonych w bazach genomicznych. Osiągnięcie to, choć zrewolucjonizowało podstawowe badania biochemiczne, posiadało jednak jedną fundamentalną barierę operacyjną o charakterze paradygmatycznym. Było to narzędzie ściśle pasywne, działające jako mikroskop predykcyjny analizujący struktury, które ewolucja naturalna wyselekcjonowała na przestrzeni czterech miliardów lat historii życia na Ziemi.
Tymczasem natura w toku ewolucji biologicznej zbadała zaledwie znikomy, mikroskopijny ułamek teoretycznej przestrzeni sekwencyjnej i konformacyjnej polipeptydów. Dla typowego białka globularnego złożonego z zaledwie trzystu reszt aminokwasowych teoretyczna liczba możliwych kombinacji dwudziestu standardowych aminokwasów białkowych wynosi dwadzieścia do potęgi trzechsetnej, co stanowi astronomiczną wartość wielokrotnie przekraczającą szacowaną liczbę wszystkich cząstek elementarnych w całym obserwowalnym wszechświecie fizycznym. Ewolucja biologiczna była bezwzględnie ograniczona koniecznością powolnych, stopniowych, pojedynczych mutacji punktowych oraz wąskim zakresem fizjologicznych warunków środowiskowych panujących w komórkach żywych organizmów, całkowicie ignorując gigantyczne, fascynujące obszary przestrzeni molekularnej, które mogłyby realizować niezwykle użyteczne, niespotykane w naturze funkcje katalityczne, terapeutyczne czy nanomateriałowe. W ten sposób narodziła się rewolucja projektowania białek de novo, w której inżynieria molekularna odwraca wektor badawczy. Zamiast pytać, jak zwinie się dana sekwencja aminokwasowa, naukowcy definiują pożądaną funkcję biologiczną, kształt kieszeni wiążącej i geometrię centrów katalitycznych, a zaawansowane algorytmy generatywnej sztucznej inteligencji projektują od zera zupełnie nową, stabilną strukturę szkieletu węglowego wraz z dopasowaną sekwencją genetyczną.
Konwergencja fizyki statystycznej i geometrycznego uczenia maszynowego
Sukces projektowania de novo nie byłby możliwy bez fuzji dwóch pozornie odległych dyscyplin naukowych: rygorystycznej mechaniki molekularnej oraz geometrycznego głębokiego uczenia maszynowego operującego na grupach symetrii przestrzennej. Tradycyjne metody inżynierii białek, oparte na mutagenezie celowanej i przeszukiwaniu bibliotek losowych w drodze ewolucji laboratoryjnej, charakteryzowały się skrajnie niską wydajnością, wymagając miesięcy żmudnych prac laboratoryjnych dla uzyskania marginalnych zmian stabilności termicznej enzymu. Klasyczne algorytmy fizyczne, takie jak wczesne wersje pakietu Rosetta, opierały się na empirycznych funkcjach energii punktowej Lennarda-Jonesa, potencjałach elektrostatycznych Coulomba oraz sterycznych barierach kątów torsyjnych Ramachandrana, co przy próbie eksploracji nieznanych architektur prowadziło do uwięzienia obliczeń w płytkich lokalnych minimach energetycznych.
Przełomem okazało się zastąpienie sztywnych potencjałów empirycznych wielowarstwowymi reprezentacjami sieci neuronowych ekwiwariantnych względem grupy obrotów i przesunięć w przestrzeni trójwymiarowej SE(3). Sieci te nie operują na płaskich wektorach cech, lecz bezpośrednio na układach współrzędnych atomowych i lokalnych ramkach odniesienia kwasów nukleinowych i aminowych, zachowując niezmienniczość fizyczną bez względu na orientację cząsteczki w układzie współrzędnych. W połączeniu z technikami uczenia nienadzorowanego na gigantycznych korpusach sekwencji białkowych, systemy sztucznej inteligencji zyskały zdolność do wewnętrznego modelowania subtelnych reguł upakowania rdzenia hydrofobowego, geometrii mostków solnych oraz sieci wiązań wodorowych z precyzją przewyższającą najbardziej złożone symulacje chemii kwantowej DFT, skracając czas generowania nowej geometrii makrocząsteczki z tygodni do pojedynczych sekund.
Architektury dyfuzyjne RFdiffusion i generowanie szkieletów polipeptydowych
Absolutnym punktem kulminacyjnym w dziedzinie generowania struktur przestrzennych stało się zaadaptowanie probabilistycznych modeli dyfuzyjnych, które wcześniej zrewolucjonizowały syntezę obrazów dwuwymiarowych, do trójwymiarowej przestrzeni konformacyjnej makrocząsteczek. Pionierem tej transformacji stał się system RFdiffusion opracowany w zespole profesora Davida Bakera na Uniwersytecie Waszyngtońskim. Zasada działania modeli dyfuzyjnych w biologii strukturalnej polega na zdefiniowaniu procesu w przód, w którym znana, naturalna struktura białkowa jest stopniowo degradowana poprzez dodawanie szumu gaussowskiego do współrzędnych atomowych szkieletu peptydowego oraz losowe zaburzanie kątów obrotu w przestrzeni SO(3), aż do momentu, gdy cząsteczka przekształci się w całkowicie bezkształtną, chaotyczną chmurę punktów w przestrzeni.
Kluczowy proces inżynieryjny zachodzi w kierunku odwrotnym, w którym wyspecjalizowana sieć transformatorowa ekwiwariantna względem SE(3) uczy się usuwania szumu krok po kroku. Rozpoczynając od całkowicie losowego układu atomów w trójwymiarowej próżni, sieć w kilkuset iteracjach stopniowo krystalizuje wiązania peptydowe, odtwarzając lokalne motywy drugorzędowe, takie jak helisy alfa czy harmonijki beta, a następnie organizuje je w spójne, globalnie stabilne domeny trzeciorzędowe o niespotykanej w przyrodzie topologii. W przeciwieństwie do generowania grafiki komputerowej, gdzie pojedynczy rozmyty piksel nie wpływa na czytelność obrazu, w biologii strukturalnej przesunięcie atomu azotu lub węgla alfa o ułamek angstroma decyduje o powstaniu niszczycielskich naprężeń sterycznych i niemożności syntezy cząsteczki w warunkach laboratoryjnych. RFdiffusion rozwiązuje ten problem poprzez ciągłe narzucanie ograniczeń stereochemicznych i fizycznych na każdym etapie odszumiania, co gwarantuje, że wygenerowany szkielet jest w stu procentach syntetyzowalny chemicznie.
Projektowanie ukierunkowane na motyw funkcjonalny i inpainting molekularny
Prawdziwa potęga systemów dyfuzyjnych ujawnia się w możliwości warunkowania procesu generowania na ściśle zdefiniowanych wymaganiach biologicznych, co w terminologii inżynierii białek określa się jako motif scaffolding lub inpainting molekularny. Wyobraźmy sobie sytuację kliniczną, w której zespoły badawcze identyfikują na powierzchni nowo zmutowanego wirusa pandemicznego lub komórki nowotworowej specyficzny, trudny do zablokowania epitop białkowy, na przykład niestabilną pętlę receptorową odpowiedzialną za fuzję z błoną komórkową człowieka. Wykorzystując zaawansowane środowisko RFdiffusion, inżynier zamraża w trójwymiarowej przestrzeni współrzędne kilku kluczowych aminokwasów kontaktowych, które muszą wejść w bezpośrednie oddziaływanie elektrostatyczne i hydrofobowe z epitopem patogenu. Następnie algorytm dyfuzyjny buduje wokół nich od zera całkowicie nowy, idealnie dopasowany szkielet białkowy o niespotykanym w naturze ułożeniu helis i harmonijek, który z subangstromową precyzją utrzymuje te reszty w sztywnej, optymalnej geometrii wiążącej, uniemożliwiając wirusowi wniknięcie do wnętrza komórki gospodarza.
Zdolność ta eliminuje konieczność wieloletniego poszukiwania przeciwciał metodami immunizacji zwierząt laboratoryjnych czy selekcji na fagach. Zamiast czekać na losową odpowiedź układu odpornościowego myszy lub lamy, inżynier projektuje w komputerze ultrakompaktowe nanobiałko monomeryczne, które wykazuje pikomolarne powinowactwo do wybranego celu molekularnego. Takie białka syntetyczne charakteryzują się nieporównywalnie wyższą stabilnością termiczną niż naturalne przeciwciała monoklonalne, mogą być przechowywane w temperaturze pokojowej bez konieczności utrzymywania łańcucha chłodniczego i wykazują zdolność do głębszej penetracji gęstych tkanek guzów nowotworowych, co otwiera zupełnie nową epokę w onkologii precyzyjnej.
Biologiczne modele językowe ESM i problem odwrotnego zwijania sekwencji
Wygenerowanie geometrycznie spójnego i stabilnego szkieletu polipeptydowego stanowi zaledwie połowę sukcesu w inżynierii de novo. Drugim, równie krytycznym etapem jest problem odwrotnego zwijania sekwencji, znany w literaturze anglosaskiej jako inverse folding lub design sekwencji. Zadanie to polega na znalezieniu takiej sekwencji dwudziestu aminokwasów, która po zsyntetyzowaniu w komórce bakteryjnej lub w układzie bezkomórkowym spontanicznie zwinie się dokładnie w zaprojektowany przez algorytm dyfuzyjny kształt przestrzenny, nie ulegając przy tym zjawisku agregacji, denaturacji termicznej czy degradacji przez proteazy komórkowe.
Do niedawna etap ten był realizowany za pomocą algorytmów przeszukiwania kombinatorycznego, takich jak ProteinMPNN, które operują na grafowych sieciach neuronowych analizujących relacje odległościowe między węzłami szkieletu. Prawdziwą rewolucję w tym obszarze przyniosło jednak wdrożenie wielkich biologicznych modeli językowych, takich jak rodzina ESM Evolutionary Scale Modeling, rozwijana początkowo przez laboratoria Meta AI. Modele te zostały wytrenowane na setkach miliardów sekwencji białkowych pochodzących z metagenomów glebowych, oceanicznych i mikrobiomów zwierzęcych przy użyciu techniki maskowanego modelowania językowego, dokładnie analogicznie do sposobu, w jaki wielkie modele językowe uczą się gramatyki i semantyki języka naturalnego. W toku tego procesu sieć przyswoiła głęboką gramatykę ewolucyjną, rozumiejąc ukryte korelacje koewolucyjne między odległymi w sekwencji resztami aminokwasowymi, które w przestrzeni trójwymiarowej tworzą kluczowe kontakty elektrostatyczne i hydrofobowe.
Ocena prawdopodobieństwa ewolucyjnego i optymalizacja ekspresji genetycznej
Integracja modeli ESM z procesem odwrotnego zwijania pozwala na precyzyjne filtrowanie i selekcję sekwencji o najwyższym wskaźniku wiarygodności biologicznej. Model potrafi ocenić prawdopodobieństwo, z jakim dana mutacja lub zestaw aminokwasów wystąpiłby w stabilnym białku naturalnym, co pozwala na eliminację sekwencji, które choć teoretycznie pasują do szkieletu geometrycznego, w praktyce laboratoryjnej okazałyby się nierozpuszczalne lub toksyczne dla komórek gospodarza. Ponadto, biologiczne modele językowe doskonale radzą sobie z optymalizacją kodonową pod kątem konkretnych systemów ekspresyjnych, takich jak pałeczka okrężnicy Escherichia coli czy drożdże Pichia pastoris.
Dzięki temu wskaźnik sukcesu laboratoryjnego projektów de novo wzrósł z ułamka procenta, charakterystycznego dla wczesnych lat dwutysięcznych, do ponad sześćdziesięciu, a w niektórych klasach cząsteczek nawet do dziewięćdziesięciu procent. Oznacza to, że z każdych dziesięciu zaprojektowanych w komputerze i zamówionych w firmie syntezy genów sekwencji DNA, zdecydowana większość po wyprodukowaniu w bioreaktorze rozpuszcza się w buforze wodnym, przyjmuje zaplanowaną trójwymiarową strukturę potwierdzoną krystalografią rentgenowską lub kriomikroskopią elektronową Cryo-EM i wykazuje pożądaną aktywność biologiczną. Jest to skok wydajnościowy, który całkowicie redefiniuje ekonomikę przemysłu biotechnologicznego i farmaceutycznego.
Modelowanie stanów allosterycznych i dynamiki konformacyjnej makrocząsteczek
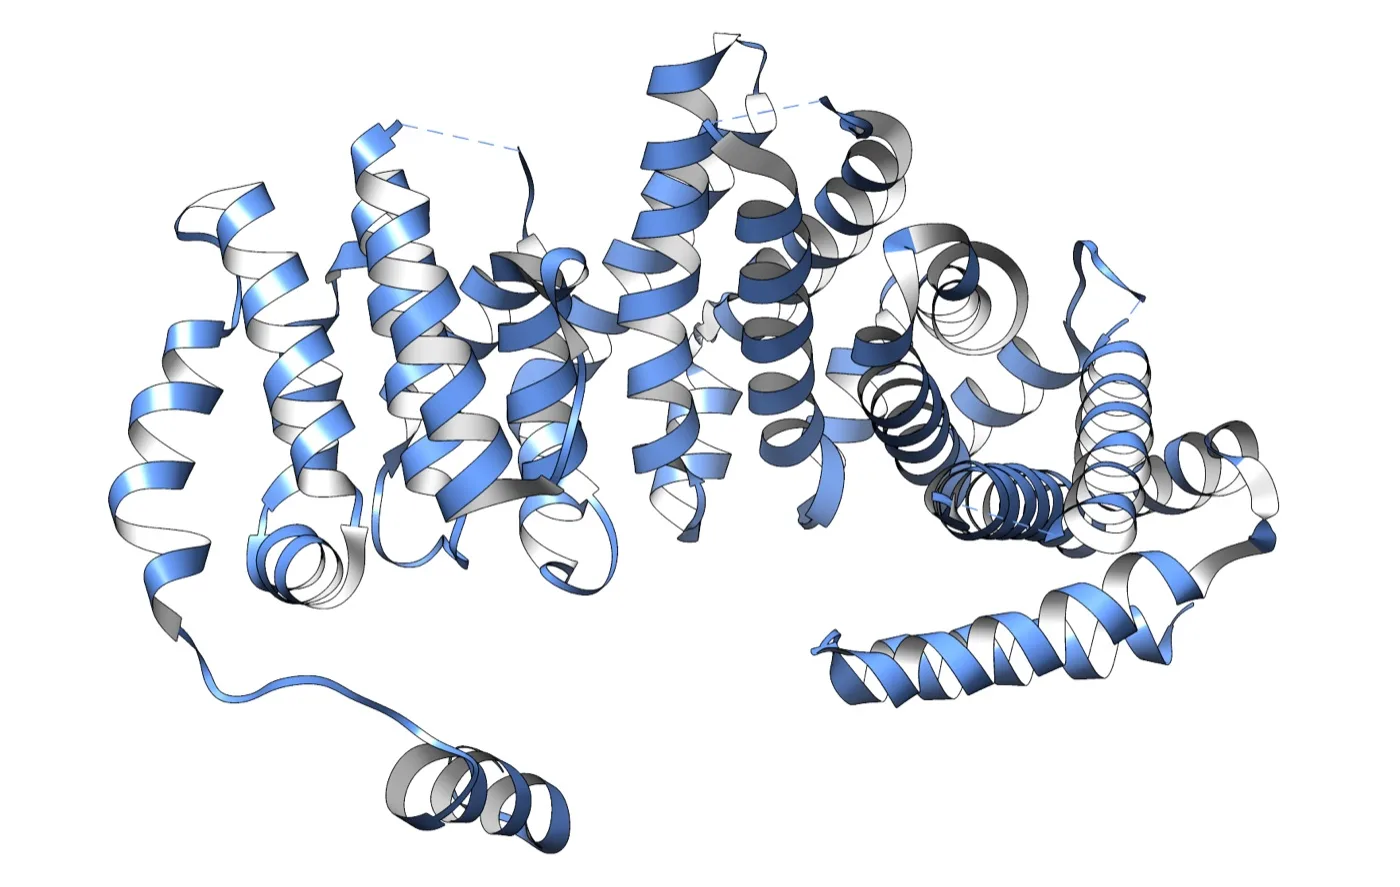
Mimo gigantycznego postępu w projektowaniu statycznych szkieletów białkowych, współczesna biologia molekularna staje przed kolejną fundamentalną barierą poznawczą, jaką jest fakt, że białka w żywej komórce nie są sztywnymi rzeźbami z kryształu, lecz dynamicznymi, nieustannie oscylującymi maszynami molekularnymi. Większość kluczowych procesów fizjologicznych, od przekazywania sygnałów przez receptory błonowe sprzężone z białkiem G GPCR, poprzez replikację DNA, aż po regulację szlaków metabolicznych, opiera się na zjawisku allosterii. Allosteria polega na tym, że związanie małej cząsteczki sygnałowej lub liganda w jednym, odległym rejonie białka wywołuje kaskadowe przegrupowanie wiązań wodorowych i mostków solnych, prowadząc do zmiany konformacji przestrzennej w odległym o kilkadziesiąt angstremów centrum aktywnym i włączenia lub wyłączenia jego aktywności biologicznej.
Statyczne modele strukturalne, które dominowały w pierwszej fazie rewolucji uczenia maszynowego, były całkowicie ślepe na stany przejściowe i wielowymiarowy krajobraz energii swobodnej Gibbsa cząsteczki biologicznej w roztworze wodnym. Klasyczny model predykcyjny potrafił wygenerować zaledwie jedną, najbardziej prawdopodobną konformację stanu spoczynkowego, ignorując stany aktywne, półotwarte, przejściowe czy allosterycznie zablokowane, które w rzeczywistości biologicznej stanowią faktyczny cel farmakologiczny dla nowoczesnych leków nowej generacji. Odpowiedzią nowej fali bioinżynierii molekularnej jest przejście od statycznego próbkowania przestrzennego do generatywnych modeli dynamicznych opartych na sieciach przepływów normalizujących i dyfuzji riemannowskiej. Modele te potrafią wygenerować pełen rozkład prawdopodobieństwa stanów konformacyjnych oraz przewidzieć bariery entalpijno-entropowe między nimi w ułamku sekundy, bez konieczności prowadzenia wielotygodniowych, kapitałochłonnych symulacji dynamiki molekularnej na potężnych superkomputerach wyposażonych w setki akceleratorów graficznych.
Przełamywanie barier w projektowaniu molekularnych przełączników logicznych
Zdolność do przewidywania i projektowania stanów allosterycznych otwiera drogę do stworzenia zupełnie nowej klasy leków określanych jako molekularne przełączniki logiczne. Zamiast klasycznego leku, który blokuje dany receptor w sposób ciągły, wywołując przy tym liczne skutki uboczne w zdrowych tkankach, inżynierowie de novo projektują białka wielodomenowe, które aktywują się wyłącznie w obecności dwóch niezależnych biomarkerów charakterystycznych dla mikrośrodowiska guza nowotworowego, realizując funkcję logiczną koniunkcji AND.
W strukturze spoczynkowej zaprojektowane białko utrzymuje domenę terapeutyczną w stanie zablokowanym za pomocą specjalnie skonstruowanego zamka allosterycznego o wysokiej energii stabilizacji. Dopiero w momencie, gdy cząsteczka trafi do tkanki nowotworowej o podwyższonym stężeniu specyficznej proteazy oraz obniżonym pH, dochodzi do rozplecenia pętli allosterycznej, zmiany konformacji szkieletu i uwolnienia domeny cytotoksycznej, która inicjuje apoptozę wyłącznie komórek zmienionych chorobowo. Równolegle rozwija się syntetyczne kanały jonowe i pory błonowe otwierane impulsami światła widzialnego lub falami ultradźwiękowymi, co stanowi fundament nowej gałęzi medycyny, jaką jest syntetyczna optogenetyka i mechanobiologia precyzyjna.
Przełom w inżynierii enzymatycznej: Biokatalizatory rozkładające tworzywa sztuczne i wychwytujące węgiel
Poza sektorem biomedycznym, najbardziej spektakularnym i pilnym zastosowaniem generatywnego projektowania białek jest inżynieria środowiskowa i przemysłowa biokataliza. Współczesna gospodarka opiera się na procesach chemicznych prowadzonych w ekstremalnych temperaturach i pod gigantycznym ciśnieniem, z udziałem drogich i toksycznych katalizatorów metalicznych z grupy platynowców, co generuje olbrzymi ślad węglowy i odpady niebezpieczne. Zastąpienie tych procesów enzymami pracującymi w łagodnych warunkach wodnych w temperaturze pokojowej było przez dekady marzeniem zielonej chemii, hamowanym przez fakt, że enzymy naturalne są niestabilne w obecności rozpuszczalników organicznych i tracą aktywność w temperaturach powyżej pięćdziesięciu stopni Celsjusza.
Zastosowanie systemów RFdiffusion i ESM pozwoliło na przełamanie tej bariery poprzez projektowanie superstabilnych enzymów de novo, wyposażonych w syntetyczne centra katalityczne zdolne do rozrywania wiązań chemicznych niewystępujących w przyrodzie. Koronnym przykładem tej technologii jest synteza zaawansowanych wariantów enzymów depolimeryzujących tworzywa sztuczne, takich jak PET-azy i MHET-azy rozkładające politereftalan etylenu. Poprzez usztywnienie szkieletu polipeptydowego i przeprojektowanie kieszeni wiążącej polimer, zespoły badawcze uzyskały enzymy zdolne do całkowitej depolimeryzacji butelki plastikowej do czystych kwasów tereftalowych i glikolu etylenowego w czasie kilkunastu godzin w temperaturze siedemdziesięciu stopni Celsjusza, umożliwiając prawdziwy recykling tworzyw sztucznych w nieskończonym obiegu zamkniętym bez utraty jakości materiału.
Enzymatyczny wychwyt dwutlenku węgla i biosynteza chemikaliów strategicznych
Równolegle laboratoria na całym świecie pracują nad stworzeniem syntetycznych odpowiedników enzymu RuBisCO, odpowiedzialnego w chloroplastach roślin za wiązanie dwutlenku węgla w procesie fotosyntezy. Naturalny RuBisCO jest enzymem skrajnie powolnym i nieefektywnym, często mylącym cząsteczkę dwutlenku węgla z cząsteczką tlenu, co prowadzi do marnotrawnego procesu fotooddychania. Projektowanie de novo sztucznych szlaków asymilacji węgla pozwala na stworzenie biokatalizatorów o szybkości reakcji przewyższającej naturalne enzymy roślinne o ponad rząd wielkości, otwierając perspektywę budowy biologicznych reaktorów wychwytu CO2 bezpośrednio z gazów spalinowych zakładów przemysłowych i przekształcania go w biopaliwa lub prekursory tworzyw sztucznych.
W chemii precyzyjnej białka de novo umożliwiają z kolei syntezę skomplikowanych enancjomerycznie czystych leków chiralnych bez konieczności stosowania drogich etapów rozdziału optycznego. Maszyny molekularne projektowane z dokładnością do pojedynczych ułamków angstroma potrafią selektywnie stabilizować stan przejściowy reakcji chemicznej, obniżając energię aktywacji i kierując syntezę wyłącznie w stronę pożądanego stereoizomeru, co pozwala na drastyczną redukcję kosztów produkcji zaawansowanych farmaceutyków i wyeliminowanie toksycznych produktów ubocznych z procesów syntezy wielkotonażowej.
Ryzyko technologii podwójnego zastosowania: Biobezpieczeństwo i wyścig regulacyjny
Gwałtowna demokratyzacja potężnych narzędzi generatywnej sztucznej inteligencji w domenie biologii molekularnej, obok niekwestionowanych korzyści dla medycyny i ekologii, rodzi bezprecedensowe zagrożenia o charakterze asymetrycznym dla globalnego bezpieczeństwa biologicznego. Do niedawna synteza groźnego patogenu lub toksyny białkowej wymagała dostępu do rzadkich próbek biologicznych, wysoce wyspecjalizowanych laboratoriów o rygorystycznym stopniu hermetyczności BSL-4 oraz wieloletniego doświadczenia praktycznego wąskiej grupy wirusologów i mikrobiologów. Pojawienie się modeli takich jak RFdiffusion i ESM całkowicie znosi tę barierę wejścia, stwarzając ryzyko, że podmioty niepaństwowe lub zradykalizowane jednostki będą w stanie zaprojektować w domowym zaciszu na standardowym komputerze z kartą graficzną nowatorskie toksyny białkowe lub patogeny omijające istniejące systemy odpornościowe człowieka.
Szczególny niepokój społeczności międzynarodowej budzi zdolność modeli do projektowania cząsteczek zdolnych do ucieczki immunologicznej. Złośliwy aktor mógłby wykorzystać narzędzia inpaintingu molekularnego do zmodyfikowania zewnętrznych epitopów znanych wirusów odzwierzęcych, takich jak wirusy grypy ptasiej H5N1 czy filowirusy, zachowując nienaruszoną zdolność wiązania się z ludzkimi receptorami komórkowymi, lecz całkowicie uniemożliwiając neutralizację patogenu przez istniejące przeciwciała nabyte w wyniku szczepień lub wcześniejszych infekcji. Co gorsza, zaprojektowane de novo białko może nie wykazywać jakiejkolwiek sekwencyjnej zbieżności ze znanymi bazami toksyn, co sprawia, że tradycyjne filtry sekwencyjne stosowane przez komercyjne firmy syntetyzujące DNA pozostają wobec takich struktur całkowicie bezradne.
Konieczność globalnego nadzoru nad syntezą DNA i odpowiedzialnego rozwoju AI
W obliczu tych egzystencjalnych wyzwań społeczność naukowa i rządy wiodących państw podejmują pilne działania mające na celu stworzenie nowej architektury bioasekuracji w erze cyfrowej syntezy. Pierwszym filarem nowego systemu musi stać się bezwzględny, powszechny wymóg skanowania wszystkich zamówień na syntezę kwasów nukleinowych DNA i RNA nie tylko pod kątem dopasowania sekwencyjnego do znanych patogenów, ale przede wszystkim przy użyciu zaawansowanych modeli predykcji strukturalnej i funkcjonalnej, które potrafią zidentyfikować potencjalną patogenność i toksyczność cząsteczki na podstawie jej geometrii trójwymiarowej.
Drugim filarem jest wprowadzenie rygorystycznych protokołów bezpieczeństwa w samych modelach generatywnych, obejmujących usuwanie z korpusów treningowych sekwencji najbardziej śmiercionośnych toksyn biologicznych oraz wbudowywanie zautomatyzowanych blokad uniemożliwiających generowanie cząsteczek o profilu wiązania zagrażającym zdrowiu publicznemu. Stoimy w decydującym, fundamentalnym punkcie zwrotnym historii naszej cywilizacji, w którym elementarny kod życia biologicznego stał się w pełni programowalny w dokładnie ten sam zmatematyzowany sposób, w jaki od dekad programujemy zaawansowane cyfrowe systemy komputerowe i układy scalone. Zdolność ludzkości do odpowiedzialnego, transparentnego i globalnego zarządzania tą potężną technologią podwójnego zastosowania ostatecznie zadecyduje o tym, czy generatywne projektowanie białek de novo zapamiętane zostanie jako zbawienny fundament nowej ery medycyny regeneracyjnej, nieograniczonej czystej energii i zrównoważonego rozwoju przemysłowego, czy też jako zarzewie bezprecedensowych kryzysów geopolitycznych i biologicznych w niespokojnym XXI wieku.
Czytaj również w dziale Sztuczna Inteligencja

Architektury Reasoning i Test-Time Compute w generatywnej sztucznej inteligencji: Jak przeszukiwanie drzewa myśli MCTS i procesowe modele nagrody PRM przełamują prawa skalowania Chinchilla

Modele Foundation w robotyce humanoidalnej i uczenie ze sprzężeniem VLA: Jak architektury Vision-Language-Action oraz policyjne sieci dyfuzyjne przełamują paradoks Moraveca

Komentarze czytelników
3Dołącz do dyskusji pod artykułem
Zaloguj się, aby dodać komentarz i podzielić się swoją opinią na temat tego artykułu.