
Przeprogramować fotosyntezę: Syntetyczne enzymy, cykl CETCH i sztuczne wiązanie węgla
Ewolucyjny kompromis: Fatalna niedoskonałość enzymu RuBisCO
Życie na Ziemi opiera się na fotosyntezie, a jednak z czysto inżynieryjnego punktu widzenia proces ten jest uderzająco nieefektywny. Większość upraw rolniczych, w tym pszenica, ryż, soja czy ziemniaki, przekształca w biomasę zaledwie od jednego do dwóch procent padającej na liście energii promieniowania słonecznego. Głównym wąskim gardłem całego aparatu fotosyntetycznego jest białko odpowiedzialne za asymilację nieorganicznego dwutlenku węgla z atmosfery – karboksylaza rybulozo-1,5-bisfosforanu, powszechnie znana jako RuBisCO. Chociaż stanowi ona najobficiej występujące białko na naszej planecie, odpowiadając za ponad połowę rozpuszczalnych białek w liściach roślin, jej parametry kinetyczne budzą zdumienie współczesnych enzymologów.
RuBisCO jest enzymem skrajnie powolnym. Podczas gdy typowe enzymy komórkowe przeprowadzają tysiące, a nawet miliony operacji katalitycznych na sekundę, pojedyncza cząsteczka RuBisCO asymiluje zaledwie od dwóch do pięciu cząsteczek dwutlenku węgla w ciągu sekundy. Aby zrekompensować tę ślamazarność, komórki roślinne muszą syntetyzować gigantyczne ilości tego enzymu, lokując w nim ogromne zasoby cennego azotu glebowego. Jednak prawdziwym dramatem biologicznym jest brak specyficzności substratowej. RuBisCO wyewoluowało w epoce prekambryjskiej, ponad trzy miliardy lat temu, gdy w atmosferze ziemskiej dominował dwutlenek węgla, a stężenie wolnego tlenu było bliskie zeru. Enzym ten nigdy nie musiał rozróżniać pomiędzy cząsteczką CO2 a strukturalnie zbliżoną cząsteczką O2.
W dzisiejszej atmosferze, zawierającej dwadzieścia jeden procent tlenu i zaledwie około czterystu dwudziestu części na milion dwutlenku węgla, RuBisCO popełnia fatalne błędy. W co czwartym lub co trzecim cyklu katalitycznym zamiast dwutlenku węgla enzym przyłącza cząsteczkę tlenu. Zamiast dwóch cząsteczek trójwęglowego 3-fosfoglicerynianu powstaje jedna cząsteczka toksycznego dwuwęglowego 2-fosfoglikolanu. Aby zneutralizować ten toksyczny metabolit i odzyskać węgiel, roślina zmuszona jest uruchomić skomplikowany, energochłonny szlak fotorespiracji, przebiegający kolejno przez chloroplasty, peroksysomy i mitochondria. W procesie tym komórka traci do czterdziestu procent zasymilowanego wcześniej węgla oraz marnuje ogromne zasoby adenozynotrójfosforanu ATP i fosforanu dinukleotydu nikotynoamidoadeninowego NADPH.
Przełom w Marburgu: Narodziny syntetycznego cyklu CETCH
Przez dziesięciolecia próby genetycznej modyfikacji enzymu RuBisCO kończyły się fiaskiem. Każda mutacja zwiększająca specyficzność wobec dwutlenku węgla prowadziła do dalszego drastycznego spadku szybkości katalitycznej, a próby przyspieszenia enzymu skutkowały katastrofalnym wzrostem podatności na reakcję z tlenem. Zdając sobie sprawę z tego biochemicznego ślepego zaułka, naukowcy z Instytutu Mikrobiologii Lądowej imienia Maxa Plancka w Marburgu, pod kierownictwem profesora Tobiasa Erba, podjęli decyzję o porzuceniu szlaków wyewoluowanych w toku ewolucji naturalnej i zaprojektowaniu syntetycznego cyklu wiązania węgla całkowicie od podstaw, w paradygmacie bottom-up synthetic biology.
Efektem tych prac stał się cykl CETCH, którego nazwa pochodzi od kluczowych metabolitów pośrednich: krotonylo-CoA, etylomalonylo-CoA oraz hydroksymaślano-CoA. Zamiast enzymu RuBisCO sercem nowego szlaku uczyniono zupełnie inną klasę białek – karboksylazy enoilo-CoA, w skrócie ECR. Enzymy te, wyizolowane z purpurowych bakterii niosiarkowych Rhodobacter sphaeroides oraz z bakterii glebowych, należą do najszybszych i najbardziej efektywnych biokatalizatorów asymilacji węgla znanych nauce. Ich szybkość obrotu kcat jest od dziesięciu do dwudziestu razy wyższa niż w przypadku RuBisCO, a co najważniejsze, enzymy ECR charakteryzują się niemal absolutną specyficznością wobec dwutlenku węgla i są całkowicie obojętne na obecność tlenu atmosferycznego.
Zbudowanie funkcjonalnego cyklu CETCH in vitro wymagało tytanicznej pracy z zakresu inżynierii białek. Naukowcy musieli połączyć siedemnaście enzymów pochodzących z dziewięciu różnych organizmów, reprezentujących wszystkie trzy domeny życia: bakterie, archeony oraz eukarionty. Każdy z tych biokatalizatorów musiał zostać precyzyjnie dobrany pod kątem kompatybilności termodynamicznej, optymalnego pH oraz braku krzyżowych reakcji hamowania produktem. Gotowy cykl CETCH przekształca dwutlenek węgla bezpośrednio w glioksylan, zużywając przy tym o dwadzieścia procent mniej energii chemicznej w postaci ATP i równoważników redukcyjnych niż naturalny cykl Calvina-Bensona. Co więcej, w warunkach laboratoryjnych szlak ten wiąże CO2 kilkukrotnie szybciej, całkowicie eliminując zjawisko fotorespiracji.
Od probówki do żywej komórki: Inżynieria metaboliczna in vivo
Prawdziwym wyzwaniem inżynieryjnym okazało się przeniesienie sztucznego szlaku z kontrolowanego środowiska probówki do wnętrza żywego organizmu. Wprowadzenie kilkunastu obcych genów kodujących enzymy cyklu CETCH do genomu bakterii Escherichia coli lub sinic powodowało początkowo potężny szok metaboliczny. Żywa komórka to dynamiczna sieć tysięcy sprzężonych ze sobą reakcji biochemicznych; pojawienie się nowych metabolitów powodowało drenaż kluczowych pul koenzymu A, hamowało endogenne szlaki glikolizy oraz uruchamiało komórkowe mechanizmy stresowe.
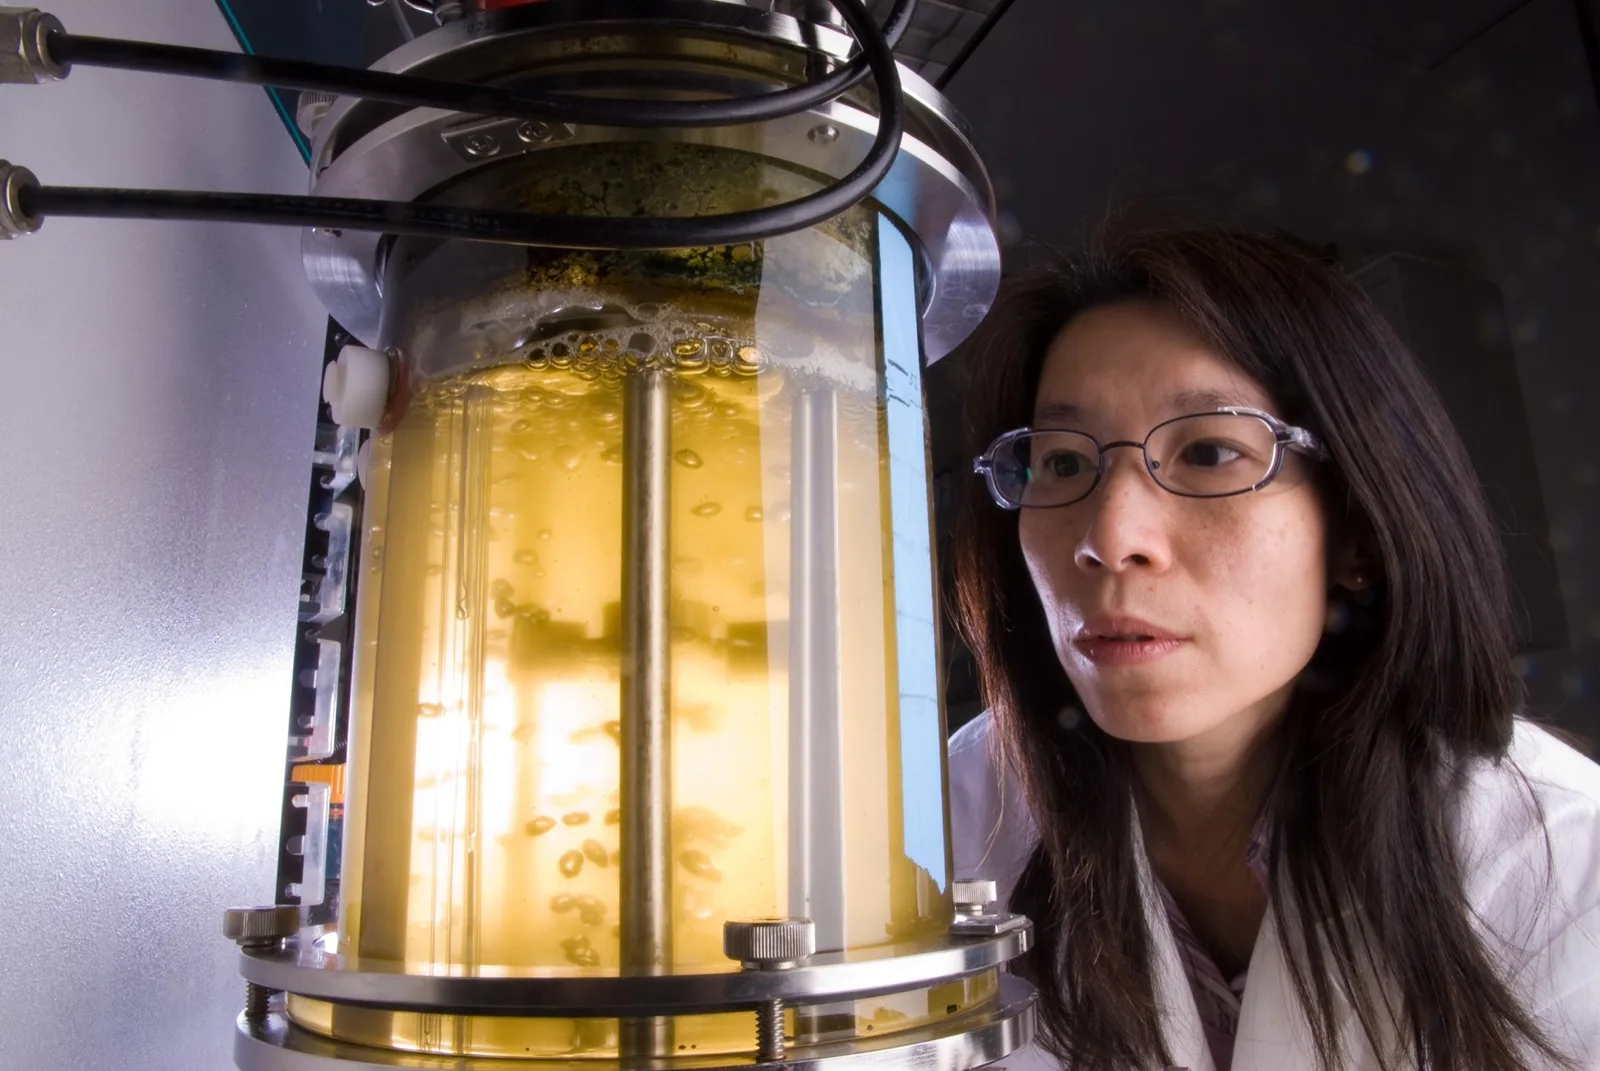
Aby przezwyciężyć te bariery, bioinżynierowie zastosowali zaawansowane techniki ewolucji adaptacyjnej oraz inżynierii genomowej wspomaganej przez CRISPR-Cas9. W pierwszym etapie naukowcy wyłączyli w genomie komórki gospodarza kluczowe geny odpowiedzialne za asymilację glukozy, zmuszając bakterię do czerpania węgla wyłącznie ze szlaku syntetycznego pod groźbą śmierci. W procesie wielomiesięcznej ciągłej hodowli w bioreaktorach chemostatowych populacje bakteryjne wyselekcjonowały mutacje precyzyjnie równoważące ekspresję poszczególnych enzymów cyklu CETCH, koordynując ich pracę z natywnym cyklem kwasu cytrynowego Krebsa.
Kolejnym milowym krokiem jest implementacja cykli syntetycznych bezpośrednio do chloroplastów roślin wyższych. Chloroplasty, będące potomkami dawnych endosymbiotycznych sinic, posiadają własny miniaturowy genom, do którego można precyzyjnie wprowadzać kasety genetyczne za pomocą pistoletów genowych w technice biolistyki. Zastąpienie roślinnego genu rbcL kodującego dużą podjednostkę RuBisCO genami kodującymi enzymy karboksylazy enoilo-CoA otwiera perspektywę stworzenia upraw rolniczych o plonach wyższych o dwadzieścia do czterdziestu procent przy jednoczesnym ograniczeniu zapotrzebowania na wodę i nawozy sztuczne.
Projektowanie de novo: Sztuczna inteligencja na usługach enzymologii
Przełom w biologii syntetycznej zbiegł się w czasie z rewolucją w modelach głębokiego uczenia maszynowego wyspecjalizowanych w biofizyce strukturalnej. Modele takie jak AlphaFold 3, RFdiffusion oraz zaawansowane białkowe modele językowe z rodziny ESM umożliwiły przejście od modyfikacji istniejących enzymów naturalnych do projektowania biokatalizatorów de novo, bezpośrednio z poziomu zapisu cyfrowego.
Tradycyjna ewolucja molekularna w laboratorium opierała się na tworzeniu losowych bibliotek mutacji i żmudnym przesiewaniu milionów wariantów w poszukiwaniu rzadkich zysków funkcji. Dziś generatywne sieci neuronowe traktują geometrię kieszeni katalitycznej enzymu jak problem optymalizacji przestrzennej. Inżynier może zdefiniować w programie komputerowym dokładne współrzędne atomowe stanu przejściowego reakcji asymilacji CO2, a algorytm wygeneruje sekwencję aminokwasów, która zwinie się w idealnie dopasowaną strukturę przestrzenną o minimalnej energii swobodnej.
Dzięki projektowaniu generatywnemu udało się stworzyć całkowicie nowe syntetyczne enzymy karboksylacyjne, które nie posiadają żadnych homologów w bazach danych ewolucji ziemskiej. Enzymy te wykazują niespotykaną w naturze stabilność termiczną, zachowując aktywność katalityczną w temperaturach przekraczających sześćdziesiąt stopni Celsjusza oraz w środowisku rozpuszczalników organicznych. Pozwala to na prowadzenie przemysłowych procesów biokonwersji gazów w warunkach, w których naturalne białka roślinne uległyby natychmiastowej denaturacji.
Elektromikrobiologia: Fuzja prądu z OZE i biologii w reaktorach chemolitotrofów
Najbardziej obiecującym zastosowaniem syntetycznych szlaków asymilacji węgla nie jest rolnictwo polowe, lecz przemysłowa biotechnologia bezglebowa, w której biologia zostaje bezpośrednio połączona z elektrochemią. Klasyczna fotosynteza jest ograniczona do wąskiego pasma widzialnego światła słonecznego, podczas gdy nowoczesne panele fotowoltaiczne przekształcają energię słońca w prąd z wydajnością przekraczającą dwadzieścia procent, a turbiny wiatrowe operują z jeszcze wyższą sprawnością.
Koncepcja elektro-biologicznego wiązania węgla opiera się na rozdzieleniu fazy pozyskiwania energii od fazy syntezy biomasy. Tani prąd z odnawialnych źródeł energii zasila elektrolizery wody, wytwarzając zielony wodór lub zasilając elektrochemiczne reaktory redukcji CO2, w których gaz cieplarniany jest bezpośrednio przekształcany na miedzianych lub niklowych elektrodach w prosty nośnik węgla – kwas mrówkowy lub metanol. Mrówczan jest płynem doskonale rozpuszczalnym w wodzie, nietoksycznym w niskich stężeniach i łatwym w magazynowaniu, co eliminuje konieczność napowietrzania bioreaktorów trudno rozpuszczalnym gazowym CO2.
W kolejnym etapie roztwór mrówczanu trafia do fermentorów zasiedlonych przez zmodyfikowane szczepy bakterii chemolitotroficznych, takich jak Cupriavidus necator lub Ralstonia eutropha. Drobnoustroje te, wyposażone w syntetyczne szlaki asymilacji mrówczanu oparte na syntetazach formylo-tetrahydrofolianowych, wykorzystują węgiel z kwasu mrówkowego do błyskawicznej budowy łańcuchów węglowodorowych. Całkowita wydajność konwersji energii elektrycznej w energię chemiczną biomasy w takich układach hybrydowych przekracza dziesięć procent, deklasując naturalną fotosyntezę roślin o rząd wielkości.
Fotobioreaktory nowej generacji: Przemysłowa fabryka molekuł z gazów odlotowych
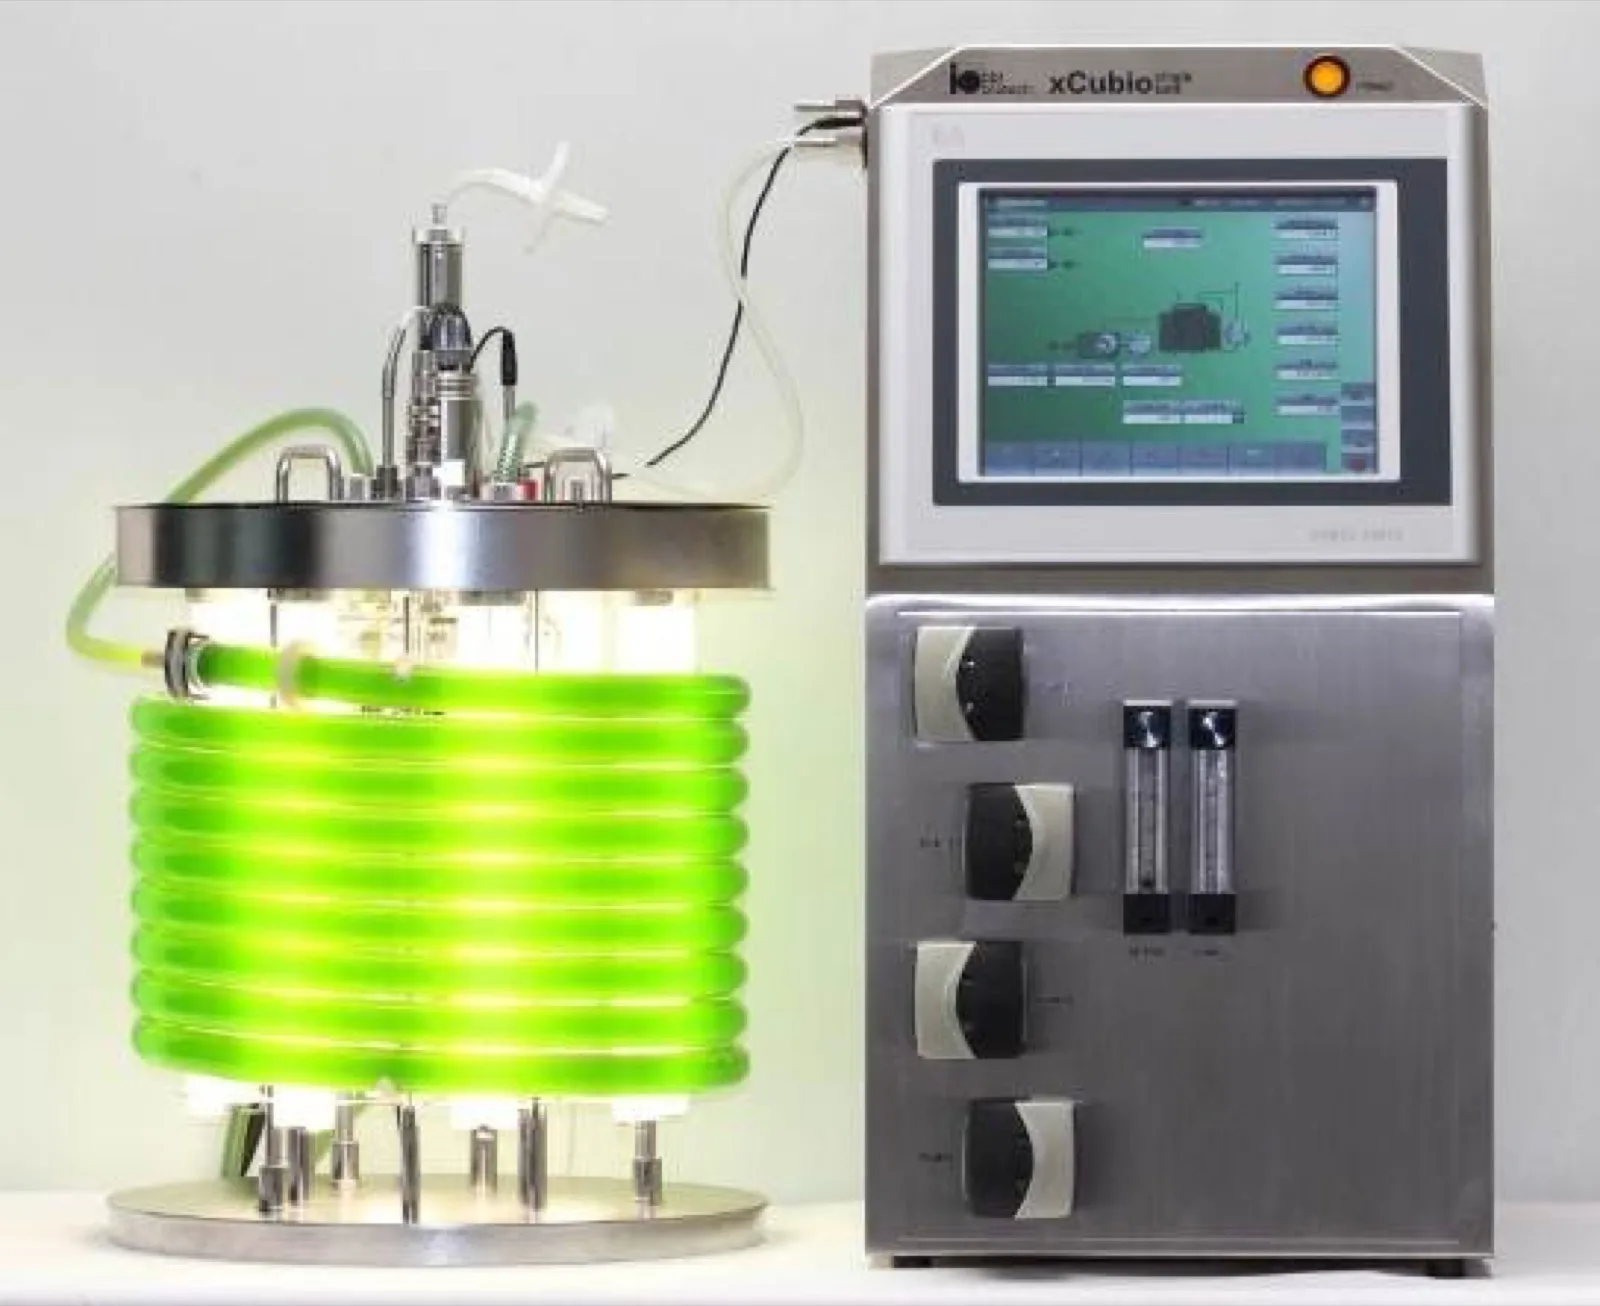
Przejście od skali laboratoryjnej do instalacji przemysłowych wymagało całkowitej rewolucji w konstrukcji fotobioreaktorów PBR. Tradycyjne otwarte stawy hodowlane typu raceway ponds charakteryzują się fatalnym wykorzystaniem światła, wysokim parowaniem wody oraz permanentnym ryzykiem skażenia przez dzikie szczepy glonów i pierwotniaków. Współczesna biotechnologia opiera się na zamkniętych, ściśle kontrolowanych reaktorach rurowych, kolumnowych oraz panelowych wykonanych ze szkła borokrzemowego lub polimerów fluorowych o wysokiej przepuszczalności światła.
W reaktorach nowej generacji kluczową rolę odgrywa dynamiczne sterowanie oświetleniem fotonicznym. Zastosowanie programowalnych matryc diod LED o wąskich pasmach emisji w rejonie czerwieni 660 nanometrów oraz błękitu 450 nanometrów pozwala na dostarczenie komórkom wyłącznie tych długości fal, które są bezpośrednio absorbowane przez centra reakcji fotosystemów PSI i PSII. Dodatkowo diody pracują w trybie mikroimpulsowym: światło jest podawane w mikrosekundowych błyskach zsynchronizowanych z czasem transferu elektronów w łańcuchu oddechowym chloroplastu, co zapobiega zjawisku fotoinhibicji i niszczeniu aparatów fotosyntetycznych przez nadmiar fotonów.
Równie istotna jest dynamika płynów wewnątrz reaktora. Aby zapewnić idealny transport masy gaz-ciecz bez uszkadzania delikatnych błon komórkowych siłami ścinającymi, stosuje się zaawansowane układy mikrobąbelkowania CO2 oraz zoptymalizowane statyczne mieszalniki hydrodynamiczne. Reaktor jest zasilany bezpośrednio oczyszczonymi gazami spalinowymi z cementowni, hut stali lub biogazowni, przekształcając strumienie emisji przemysłowych w czyste surowce chemiczne o wysokiej wartości dodanej: biopolimery polihydroksyalkanianowe PHA, kwas polimlekowy PLA, białka paszowe i spożywcze dla ludzi oraz zaawansowane prekursory leków.
Geopolityka białka i dekarbonizacja globalnego łańcucha żywnościowego
Implikacje wdrożenia syntetycznego wiązania węgla wykraczają daleko poza sektor ochrony klimatu, dotykając samych fundamentów globalnego bezpieczeństwa żywnościowego i geopolityki. Tradycyjne rolnictwo odpowiada za ponad siedemdziesiąt procent globalnego zużycia wody słodkiej, zajmuje połowę zdatnych do użytku gruntów planety i jest głównym źródłem eutrofizacji wód oraz wylesiania lasów deszczowych pod uprawy soi paszowej i pastwiska dla bydła.
Przemysłowa produkcja białka bakteryjnego z dwutlenku węgla i zielonego wodoru – proces określany jako power-to-food – pozwala na całkowite uniezależnienie produkcji kalorii i protein od warunków pogodowych, susz, wojen handlowych oraz powierzchni gruntów ornych. Fabryka biotechnologiczna zajmująca powierzchnię zaledwie jednego kilometra kwadratowego, zasilana energią wiatrową i słoneczną, jest w stanie wyprodukować taką samą ilość wysokowartościowego białka o kompletnym profilu aminokwasowym, jak tradycyjne plantacje soi o powierzchni tysiąca kilometrów kwadratowych w Amazonii, zużywając przy tym o dziewięćdziesiąt dziewięć procent mniej wody.
Kraje ubogie w grunty orne i zasoby wody słodkiej, lecz bogate w energię odnawialną – państwa Bliskiego Wschodu, Afryki Północnej czy wyspiarskie gospodarki Azji – zyskują narzędzie do osiągnięcia pełnej suwerenności żywnościowej. Jednocześnie kraje rozwinięte mogą uwolnić miliony hektarów gruntów rolnych na potrzeby renaturyzacji, odbudowy bioróżnorodności i naturalnego zalesiania. Przeprogramowanie fotosyntezy, z laboratoryjnej ciekawostki z przełomu stuleci, staje się w ten sposób jedną z najważniejszych technologii bazowych dwudziestego pierwszego wieku, redefiniując relację między cywilizacją techniczną a biosferą.
Szlaki alternatywne: Od cyklu TaCo po redukcyjny szlak Wooda-Ljungdahla
Cykl CETCH nie jest jedyną syntetyczną alternatywą dla natywnej fotosyntezy. Współczesna biologia obliczeniowa przeszukuje przestrzeń milionów potencjalnych reakcji chemicznych w poszukiwaniu szlaków o jeszcze wyższej sprawności energetycznej. Jednym z najbardziej obiecujących dokonań w tej dziedzinie jest cykl TaCo, którego nazwa pochodzi od pośredniego związku tartronylo-CoA. Szlak ten wykorzystuje rzadką klasę enzymów zdolnych do bezpośredniej karboksylacji dwuwęglowych reszt acetylowych z pominięciem energochłonnych etapów fosforylacji, co pozwala na zaoszczędzenie kolejnych dwóch moli ATP na każdy mol zsyntetyzowanego pirogronianu.
Równolegle inżynierowie metaboliczni adaptują pradawne szlaki beztlenowych bakterii chemoautotroficznych, w szczególności redukcyjny szlak acetylo-CoA, znany jako szlak Wooda-Ljungdahla. Jest to jedyny znany w przyrodzie naturalny mechanizm asymilacji węgla, który charakteryzuje się dodatnim bilansem energetycznym netto: bakterie acetogenne wiążą dwie cząsteczki dwutlenku węgla w jedną cząsteczkę kwasu octowego, generując przy tym energię chemiczną zamiast jej zużywać. Choć szlak ten jest niezwykle wrażliwy na obecność nawet śladowych ilości tlenu atmosferycznego z powodu obecności labilnych centrów żelazowo-siarkowych w dehydrogenazie tlenku węgla i syntazie acetylo-CoA, jego zastosowanie w szczelnych bioreaktorach przemysłowych zasilanych gazem syntezowym stanowi przełom w produkcji biopaliw drugiej i trzeciej generacji.
Kolejną fascynującą ścieżką jest cykl MOG, łączący syntetyczną karboksylację z enzymami metabolizmu kwasu jabłkowego i glioksalowego. Szlak ten cechuje się najkrótszym możliwym łańcuchem katalitycznym, liczącym zaledwie osiem enzymów. Im mniej reakcji pośrednich w szlaku, tym mniejsze prawdopodobieństwo akumulacji toksycznych metabolitów ubocznych i tym łatwiejsze zbalansowanie przepływów metabolicznych w żywej komórce gospodarza.
Sztuczne organelle i mikrokompartmenty białkowe
Nawet najbardziej wydajne enzymy syntetyczne tracą swoją przewagę, jeśli ich substraty swobodnie dyfundują w cytoplazmie i uciekają z komórki. Z tego powodu kolejnym wielkim nurtem w biologii syntetycznej jest inżynieria mikrokompartmentów białkowych, określanych skrótem BMC. W przyrodzie struktury te występują u sinic i niektórych bakterii autotroficznych w postaci karboksysomów – wielościennych powłok białkowych o symetrii dwudziestościanu, przypominających kapsydy wirusów.
Karboksysom działa jak mikroskopijny reaktor ciśnieniowy. Jego białkowa powłoka wykazuje selektywną przepuszczalność: wpuszcza do wnętrza jony wodorowęglanowe, lecz stanowi szczelną barierę dla gazowego dwutlenku węgla oraz tlenu. Wewnątrz kompartmentu zlokalizowana jest anhydraza węglanowa, która błyskawicznie przekształca wodorowęglan w wolny CO2, wytwarzając lokalne stężenie gazu setki razy wyższe niż w otaczającej cytoplazmie. W ten sposób zlokalizowane w tym samym mikrootoczeniu enzymy karboksylacyjne są dosłownie zalewane substratem, co pozwala im na pracę z maksymalną szybkością wysycenia Vmax i całkowicie eliminuje reakcje uboczne.
Współcześni bioinżynierowie potrafią programować samoorganizację takich nanocząsteczek białkowych de novo. Poprzez wprowadzenie specjalnych peptydowych sekwencji sygnałowych, zwanych tagami enkapsulacji, naukowcy są w stanie skierować dowolny syntetyczny enzym – w tym enzymy cyklu CETCH czy szlaku TaCo – do wnętrza sztucznego mikroskopijnego kompartmentu. Chroni to resztę komórki przed toksycznymi aldehydami pośrednimi i drastycznie zwiększa ogólną sprawność konwersji chemicznej.
Biobezpieczeństwo, syntetyczna auksotrofia i horyzont etyczno-prawny
Skala ingerencji w fundamentalne szlaki biochemiczne życia budzi uzasadnione pytania o bezpieczeństwo biologiczne i stabilność ekosystemów. Wypuszczenie do środowiska naturalnego mikroorganizmów lub roślin uprawnych wyposażonych w syntetyczne mechanizmy fotosyntetyczne o skrajnie podwyższonej efektywności mogłoby zaburzyć równowagę biologiczną, prowadząc do niekontrolowanego wyparcia rodzimych gatunków polnych lub zakwitów syntetycznych glonów w rzekach i oceanach.
W odpowiedzi na te zagrożenia społeczność naukowa biologii syntetycznej wdraża rygorystyczne wielopoziomowe bariery bezpieczeństwa, określane mianem biocontainment. Jednym z najbardziej niezawodnych mechanizmów jest syntetyczna auksotrofia: genomy modyfikowanych szczepów są tak przeprojektowane, że do przeżycia i podziału komórkowego wymagają one stałej obecności w pożywce nienaturalnych aminokwasów, które nie występują nigdzie w przyrodzie i mogą być dostarczane wyłącznie w warunkach kontrolowanego reaktora przemysłowego. W przypadku jakiegokolwiek wycieku poza instalację komórki te giną w ciągu kilkunastu minut z powodu niemożności syntezy białek strukturalnych.
Równolegle w genomy syntetycznych autotrofów wprowadza się genetyczne wyłączniki awaryjne, tak zwane kill-switches, oparte na systemach CRISPR lub dwukomponentowych receptorach środowiskowych. Jeśli stężenie określonej substancji wskaźnikowej spadnie poniżej zadanego progu, w komórce dochodzi do aktywacji endonukleaz, które w ułamku sekundy tną własne DNA na drobne fragmenty, uniemożliwiając horyzontalny transfer genów do dzikich populacji bakteryjnych. Kształtujące się ramy prawne i etyczne muszą nadążyć za tą rewolucją, zapewniając bezpieczną ścieżkę wdrożeniową dla technologii, która może ocalić planetę przed głodem i katastrofą klimatyczną.
Chloroplasty bioniczne i półprzewodniki na granicy ze światem komórkowym
Ostatnią, najbardziej futurystyczną granicą badań nad nową fotosyntezą jest łączenie materiałów półprzewodnikowych bezpośrednio z żywymi komórkami i enzymami w tak zwanych układach bionicznych. Choć ewolucja stworzyła anteny chlorofilowe zdolne do pochłaniania kwantów światła, ich sprawność kwantowa jest ograniczona fizykochemicznymi właściwościami barwników organicznych. Zespoły badawcze z Berkeley i Harvardu udowodniły, że komórki bakteryjne mogą zostać pokryte nanoskopową warstwą półprzewodników, takich jak kropki kwantowe z siarczku kadmu lub mikronanodruty z tlenku tytanu i krzemu.
W takich układach hybrydowych sztuczny nanomateriał działa jak wysoce wydajny kolektor fotonów o szerokim spektrum absorpcji, generując pary elektron-dziura pod wpływem promieniowania słonecznego. Wzbudzone elektrony są następnie bezpośrednio transferowane przez błonę komórkową do białek łańcucha transportu elektronów, takich jak ferredoksyna, zasilać syntetyczne enzymy karboksylacyjne bez konieczności udziału naturalnych fotosystemów komórkowych. Te bioniczne mikroorganizmy wykazują sprawność asymilacji energii słonecznej wielokrotnie przewyższającą jakiekolwiek rośliny uprawne, otwierając drogę do stworzenia syntetycznych liści i samowystarczalnych materiałów budowlanych, które pod wpływem słońca pochłaniają dwutlenek węgla z powietrza i wbudowują go w strukturalne tworzywa polimerowe.
Stajemy w obliczu cywilizacyjnego przełomu, w którym węgiel przestaje być wyłącznie źródłem zanieczyszczeń i motorem zmian klimatycznych, a staje się podstawowym surowcem gospodarki o obiegu zamkniętym. Integracja cykli syntetycznych z inżynierią materiałową i odnawialnymi źródłami energii pozwala wierzyć, że w horyzoncie najbliższych dwóch dekad ludzkość wykształci zdolność do pełnej kontroli nad obiegiem węgla w skali planetarnej, godząc potrzeby rosnącej populacji z biologicznymi granicami wytrzymałości Ziemi.
Czytaj również w dziale Świat
Podmorskie kable światłowodowe i wojna o dno oceanów: Jak infrastruktura transportująca 99% ruchu internetowego, stacje lądowania CLS i głębinowe batyskafy GUGI stały się osią nowej zimnej wojny
Geoinżynieria słoneczna i aerosolowe zaciemnianie atmosfery SRM: Czy stratosferyczny dwutlenek siarki uratuje klimat czy wywoła globalny chaos geopolityczny
Komentarze czytelników
3Dołącz do dyskusji pod artykułem
Zaloguj się, aby dodać komentarz i podzielić się swoją opinią na temat tego artykułu.